
Na busca de fontes alternativas de energia, uma das opções promissoras que surgiu nos últimos anos foi o uso de certos organismos procariontes que, ao se alimentarem de matéria orgânica, geram, como resultado das quebras de ligações químicas no processo digestivo, energia elétrica. Recentemente, um grupo de pesquisadores publicou resultados de um estudo em que, ao formar uma colônia cestes seres em uma determinada superfície, formando o chamado biofilme, conseguiram gerar uma potência elétrica de cerca de 200 mW por m² de biofilme.
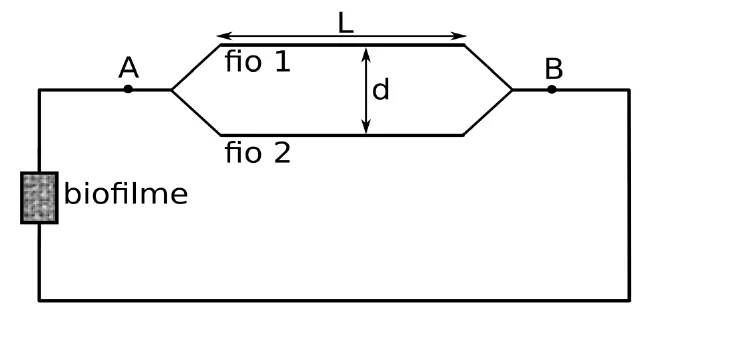
Considere a situação em que este biofilme é utilizado para gerar uma tensão de 4 V entre os pontos A e B do circuito elétrico a seguir, em que os fios 1 e 2 apresentam resistências elétricas de 3 Ω e 6 Ω respectivamente, e a resistência do restante do circuito é desprezível.
Os fios 1 e 2 têm comprimento $L=9$ m, e a distância de separação entre eles é $d=2$ mm. De acordo com o exposto, o tipo de ligação química que será rompida e a intensidade da força magnética que o fio 1 exerce sobre o fio 2, desprezando os efeitos de comprimento finito dos fios, são, respectivamente,
Dado: $\mu_0=4\pi\times10^{-7}\ \text{T·m/A}$.
Os fios 1 e 2 estão em paralelo entre A e B, sob a mesma tensão de $4\ \text{V}$:
$$i_1=\frac{4}{3}\ \text{A},\qquad i_2=\frac{4}{6}=\frac{2}{3}\ \text{A}.$$As correntes têm o mesmo sentido, então os fios se atraem com força
$$F=\frac{\mu_0\,i_1\,i_2\,L}{2\pi d}=\frac{2\times10^{-7}\cdot\frac43\cdot\frac23\cdot9}{2\times10^{-3}}=\frac{2\times10^{-7}\cdot8}{2\times10^{-3}}=8\times10^{-4}\ \text{N}.$$Os organismos se alimentam de matéria orgânica, cujas ligações quebradas na digestão são do tipo carbono-carbono (o cobre é do fio, não do alimento).
Tendo em vista o exposto, o ser vivo que forma o biofilme e a área deste, em metros quadrados, necessária para alimentar o circuito, são, respectivamente,
A resistência equivalente dos fios em paralelo é
$$R_{eq}=\frac{3\cdot6}{3+6}=2\ \Omega.$$A potência exigida do biofilme, a $4\ \text{V}$, é
$$P=\frac{U^2}{R_{eq}}=\frac{16}{2}=8\ \text{W}.$$Cada metro quadrado fornece $200\ \text{mW}=0{,}2\ \text{W}$, então
$$A=\frac{8}{0{,}2}=40\ \text{m}^2.$$Organismos procariontes que formam biofilme são bactérias.
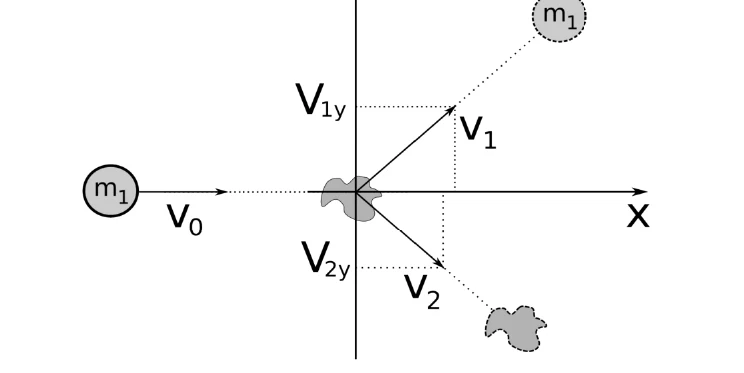
Uma experiência comum utilizando um acelerador de partículas consiste em incidir uma partícula conhecida sobre um alvo desconhecido e, a partir da análise dos resultados do processo de colisão, obter informações acerca do alvo. Um professor, para ilustrar de forma simplificada como esse processo ocorre, propôs a seguinte situação em que uma partícula de massa $m_1=0{,}2$ kg colide com um alvo que inicialmente estava em repouso, conforme a figura.
Após a colisão, obteve-se como resultado que as componentes $y$ das velocidades são respectivamente $v_{1y}=5$ m/s e $v_{2y}=-2$ m/s. Neste caso, a massa do alvo em kg é:
Antes da colisão, o movimento é só na direção $x$ e o alvo está parado, então a quantidade de movimento total na direção $y$ é nula. Ela se conserva:
$$m_1v_{1y}+m_2v_{2y}=0\ \Rightarrow\ 0{,}2\cdot5+m_2(-2)=0\ \Rightarrow\ m_2=0{,}5\ \text{kg}.$$Considere uma gota de água de 2,0 mm de diâmetro que, após infiltrar-se no solo, tenha sido completamente absorvida pelas raízes de uma planta e voltado à atmosfera, no processo de transpiração, em um local cuja temperatura ambiente é de 20 °C. Nesse contexto, qual foi o caminho percorrido por essa gota na planta a partir da raiz até a atmosfera e qual foi a energia necessária para sua evaporação completa, sabendo-se que o calor latente de evaporação da água a 20 °C é de 2,45 MJ/kg?
Dados: $\pi\approx3{,}0$; $d_{\text{água}}=1{,}0\ \text{g/cm}^3$.
Volume da esfera de raio $r=1{,}0\ \text{mm}=0{,}10\ \text{cm}$:
$$V=\frac43\pi r^3=\frac43\cdot3{,}0\cdot(0{,}10)^3=4{,}0\times10^{-3}\ \text{cm}^3.$$Massa: $m=\rho V=1{,}0\cdot4{,}0\times10^{-3}=4{,}0\times10^{-3}\ \text{g}=4{,}0\times10^{-6}\ \text{kg}$.
Energia para evaporar:
$$Q=mL=4{,}0\times10^{-6}\cdot2{,}45\times10^{6}=9{,}8\ \text{J}.$$A água sobe pelo xilema, chega ao mesófilo foliar e sai pelos estômatos.
A teoria da relatividade elaborada por Albert Einstein (1879-1950), no início do século XX, abalou profundamente os alicerces da Física clássica, que já estava bem estabelecida e testada. Por questionar os conceitos canônicos da ciência e do senso comum até então, ela tornou-se uma das teorias científicas mais populares de todos os tempos.
Que situação física, prevista pela relatividade restrita de Einstein, também está em conformidade com a Física clássica?
Na relatividade restrita, o tempo e o comprimento dependem do referencial (dilatação do tempo, contração do espaço) e a velocidade da luz é a mesma em todos os referenciais inerciais. Isso contraria a física clássica, que admite tempo absoluto (A) e soma de velocidades. Assim, A, B e C não são pontos de contato entre as duas teorias.
A diferença entre massa inercial e gravitacional não faz parte da relatividade restrita (o princípio de equivalência as iguala na relatividade geral).
A conservação da quantidade de movimento vale nas duas teorias, ainda que com expressões diferentes: $p=mv$ na clássica e $p=\gamma mv$ na relativística.

Considere uma pilha de Daniell de Cu/Mn que alimenta uma lâmpada, de acordo com a figura a seguir.
Considerando que a lâmpada seja formada por um filamento de tungstênio de 0,056 mm de diâmetro, 0,7 m de comprimento e sabendo-se que a resistividade elétrica do tungstênio é $\rho=5{,}6\times10^{-8}\ \Omega\cdot\text{m}$ e também que
$$\mathrm{Cu^{2+}+2e^-\rightarrow Cu^0}:\ E^0=-0{,}34\ \text{V}$$$$\mathrm{Mn^{2+}+2e^-\rightarrow Mn^0}:\ E^0=+1{,}18\ \text{V}$$conclui-se que o número de elétrons que atravessa o fio a cada segundo será:
Dados: $\pi\approx3{,}0$; carga do elétron: $e=1{,}6\times10^{-19}$ C.
A fem da pilha é a diferença entre os potenciais, em módulo: $\varepsilon=1{,}18+0{,}34=1{,}52\ \text{V}$. (Os sinais dos potenciais padrão estão trocados no enunciado; o valor correto da fem, porém, é o mesmo.)
Resistência do filamento, com $A=\pi d^2/4$:
$$A=\frac{3{,}0\cdot(5{,}6\times10^{-5})^2}{4}=2{,}35\times10^{-9}\ \text{m}^2,\qquad R=\frac{\rho L}{A}=\frac{5{,}6\times10^{-8}\cdot0{,}7}{2{,}35\times10^{-9}}\approx16{,}7\ \Omega.$$Corrente:
$$i=\frac{\varepsilon}{R}=\frac{1{,}52}{16{,}7}\approx0{,}091\ \text{A}.$$Elétrons por segundo:
$$n=\frac{i}{e}=\frac{0{,}091}{1{,}6\times10^{-19}}\approx5{,}7\times10^{17}.$$Em um recipiente com paredes perfeitamente condutoras de calor encontra-se uma solução altamente concentrada de ácido clorídrico a temperatura de 27 °C e à pressão atmosférica. Uma certa quantidade de pó de magnésio é colocada na solução e, imediatamente depois, o recipiente é tampado com um pistão de massa desprezível, que fica em contato com a superfície do líquido e pode deslizar sem atrito ao longo do recipiente. Quando a situação de equilíbrio é alcançada observa-se que o magnésio reagiu completamente com o ácido e que o pistão levantou-se em relação à superfície da solução devido à produção de gás. Sabendo que no processo todo o sistema realizou um trabalho de 240 J, e considerando o gás produzido como ideal, conclui-se que a massa, em gramas, de magnésio inicialmente colocada na solução foi:
Dado: $R\approx8{,}0\ \text{J/(K·mol)}$.
A reação é $\mathrm{Mg+2HCl\rightarrow MgCl_2+H_2}$: cada mol de magnésio libera um mol de $\mathrm{H_2}$.
O recipiente conduz calor, e o pistão tem massa desprezível, então o gás se expande à pressão atmosférica constante e à temperatura constante $T=300\ \text{K}$. O trabalho é
$$W=p\Delta V=nRT\ \Rightarrow\ n=\frac{240}{8{,}0\cdot300}=0{,}10\ \text{mol}.$$Com a massa molar do magnésio, $24{,}3\ \text{g/mol}$:
$$m=0{,}10\cdot24{,}3=2{,}43\ \text{g}.$$Em 1989, foi anunciada a realização em laboratório da assim chamada “fusão a frio”, um processo de fusão nuclear seletivo à temperatura ambiente realizada por meio de uma célula eletroquímica. Apesar do clamor inicial suscitado por esse resultado, experimentos sucessivos não conseguiram reproduzi-lo. De acordo com o que foi divulgado à época, núcleos de deutério $^{2}\text{H}$ se fundiam por meio das reações:
$$^{2}\text{H}+{}^{2}\text{H}\rightarrow{}^{3}\text{He}+n+E_1$$$$^{2}\text{H}+{}^{2}\text{H}\rightarrow{}^{3}\text{H}+{}^{1}\text{H}+E_2$$Para a situação apresentada, considere uma célula eletroquímica que possibilite o processo de fusão a frio gerando uma potência de 11,2 W. Na hipótese de que as duas reações aconteçam com a mesma frequência, conclui-se que os nêutrons liberados durante 1 segundo seriam:
Dados: $E_1\approx3{,}0$ MeV; $E_2\approx4{,}0$ MeV; $1\ \text{eV}=1{,}6\times10^{-19}$ J.
Se as duas reações ocorrem com a mesma frequência, em cada par (uma de cada tipo) a energia liberada é
$$E_1+E_2=7{,}0\ \text{MeV}=7{,}0\cdot10^{6}\cdot1{,}6\times10^{-19}=1{,}12\times10^{-12}\ \text{J}.$$Em $1\ \text{s}$, a célula libera $11{,}2\ \text{J}$, o que corresponde a
$$\frac{11{,}2}{1{,}12\times10^{-12}}=1{,}0\times10^{13}\ \text{pares de reações}.$$Só a primeira reação libera nêutron, uma vez por par: $1\times10^{13}$ nêutrons em um segundo.
A imagem de Radar de Abertura Sintética (SAR) é resultante da combinação das respostas geradas por meio de diferentes mecanismos de espalhamento e inclui a contribuição direta do solo, do tronco, da copa das árvores, da interação copa-solo e da reflexão dupla tronco-solo. Os componentes vegetais que agem como principais fontes de espalhamento são da mesma ordem de magnitude dos comprimentos de onda com os quais interagem. A análise das imagens do sensor SAR/R99B na banda espectral L, com 0,1 GHz de resolução horizontal e 3 m de resolução vertical, de uma região de floresta tropical, pode ser usada para monitorar
Dado: velocidade da luz: $c=3\times10^{8}$ m/s.
Com $f=0{,}1\ \text{GHz}=10^{8}\ \text{Hz}$, o comprimento de onda é
$$\lambda=\frac{c}{f}=\frac{3\times10^{8}}{10^{8}}=3\ \text{m}.$$Como os componentes vegetais que espalham a radiação têm dimensões da ordem de $\lambda$, o sensor percebe estruturas de metros: troncos, copas e, em escala maior, o contraste entre mata nativa e grandes lavouras. É isso que permite acompanhar a conversão de vegetação nativa em monocultura extensa. Culturas diversas, áreas de subsistência, igapós e seringais têm estruturas menores ou semelhantes à floresta, e a escala do sensor não as distingue com a mesma clareza.

A técnica de pintura conhecida como pontilhismo, desenvolvida na França em meados do século XIX, principalmente por George Seraut e Paul Signac, utilizou princípios de óptica na realização de suas obras. Essa técnica consiste em pintar um grande número de pequenos pontos igualmente espaçados de cores primárias, tal que a ilusão da mistura de cores é produzida somente nos olhos do observador.
De acordo com o critério de Rayleigh, dois pontos são distinguidos pelo olho humano se estiverem separados por um ângulo dado pela relação $\operatorname{sen}(\theta)=1{,}22(\lambda/d)$, em que $\lambda$ é o comprimento de onda da luz e $d$ é o diâmetro da pupila.
Considerando que, em média, $d=2{,}0$ mm e que, para ângulos pequenos, vale a relação $\operatorname{sen}(\theta)\approx\operatorname{tg}(\theta)\approx\theta$, a que distância mínima $D$, em metros, de uma pintura pontilhista um observador deve estar para observar a mistura de pontos, no caso da cor verde ($\lambda=500$ nm), se o espaçamento entre os pontos for de $\Delta x=1{,}22$ mm?
Para ver a mistura, os pontos não devem ser resolvidos: o ângulo entre eles, $\theta\approx\Delta x/D$, deve ser no máximo o ângulo mínimo de resolução:
$$\frac{\Delta x}{D}=1{,}22\,\frac{\lambda}{d}\ \Rightarrow\ D=\frac{\Delta x\,d}{1{,}22\,\lambda}.$$$$D=\frac{1{,}22\times10^{-3}\cdot2{,}0\times10^{-3}}{1{,}22\cdot5{,}0\times10^{-7}}=4{,}0\ \text{m}.$$